
Живой организм так не масштабируется, и виной тому простая геометрия. Кислород для обмена веществ поступает через поверхность — стенки лёгких и капилляров, — а питать нужно весь объём тела. Поверхность и объём растут с размером по-разному, и это рассогласование перекраивает всё устройство животного.
Оценим грубо. Если считать орган газообмена гладким, его площадь растёт как квадрат линейного размера, $S \sim L^2$. А масса, которую надо кормить, — как куб, $M \sim L^3$. Если мощность обмена $B$ упирается в площадь, то $B \sim S \sim L^2 \sim M^{2/3}$.

Стройная оценка даёт показатель 2/3. Беда в том, что природа с ней не согласна.
Если измерить обмен веществ у множества зверей — от мыши до слона — и нанести на график, точки лягут не на наклон 2/3, а на другой степенной закон. Это закон Клайбера:
$$ B \sim M^{3/4} $$
оценка порядка
Обмен растёт быстрее, чем предсказывает гладкая геометрия (3/4 больше 2/3). Откуда лишнее? Почти наверняка — из устройства «доставки». Кислород и питание разносит не гладкая поверхность, а ветвящаяся сеть: сосуды, капилляры, бронхи. Такая сеть устроена куда хитрее простого шара, и её эффективная площадь обмена растёт быстрее, чем $L^2$1.
Степенные законы масштаба — всюду в живом и неживом. Рост размера в $k$ раз увеличивает вес в $k^3$ раз, а прочность кости, пропорциональную площади сечения, только в $k^2$. Для запаса прочности толщина кости должна расти быстрее длины (диаметр примерно как $k^{3/2}$). Оттого у слона ноги-колонны, а не как у газели. Это другой степенной закон, чем у Клайбера, но из той же геометрии. Дозу лекарства считают по массе с поправкой на тот же обмен. И даже города: длина дорог и число заправок растут с населением по своим степенным законам, родственным биологическим.
Что отстаёт при увеличении и чем за это приходится платить, видно в модели: увеличивайте мышь и смотрите на массу, поверхность, кости и обмен.
Закон Клайбера: интенсивность обмена $B \sim M^{3/4}$. Объяснение через фрактальные транспортные сети организма предложили G. B. West, J. H. Brown, B. J. Enquist, «A General Model for the Origin of Allometric Scaling Laws in Biology», Science 276 (1997), 122–126. ↩
При чём здесь фракталы? Откуда в законе Клайбера ($B \sim M^{3/4}$) лишняя двенадцатая доля показателя против правила поверхности, видно из устройства органов дыхания и кровообращения. Эти системы представляют собой ветвящиеся сети, которые эффективно доставляют кислород и питательные вещества ко всем клеткам организма.
Представьте дерево кровеносных сосудов или систему дыхательных путей. Они начинаются с крупных стволов (аорта, трахея), затем многократно делятся на более мелкие ветви вплоть до мельчайших капилляров и альвеол. Эта структура напоминает фрактал — геометрическую фигуру, которая повторяет свою форму на разных масштабах.

Фрактальная размерность $D$ описывает, насколько быстро увеличивается количество элементов структуры при уменьшении масштаба наблюдения. Для простой прямой линии $D = 1$, для плоской фигуры $D = 2$, а для трёхмерного объекта $D = 3$. Однако у фракталов размерность может быть дробной, лежащей между целыми значениями.
Формально фрактальную размерность определяют следующим образом:
$$ N(r) \sim r^{-D} $$
модель
где $N(r)$ — число элементов структуры радиусом порядка $r$. Чем выше значение $D$, тем плотнее заполнено пространство структурой.
Вернёмся к обмену веществ. Площадь, доступная для газообмена, зависит от числа мелких ветвей — капилляров, альвеол, — то есть от фрактальной размерности сети. Но размерность сама по себе показателя 3/4 не даёт. Если бы площадь обмена росла как $L^D$, а масса как $L^3$, обмен шёл бы как $M^{D/3}$, и показатель мог бы быть любым между 2/3 и 1. Откуда именно 3/4, видно из допущений модели, о которых ниже.
Уэст, Браун и Энквист показали, что такая фрактальная структура приводит к зависимости интенсивности метаболизма от массы тела со степенью $\frac{3}{4}$. Прибавка к показателю — 1/12 сверх «правила поверхности» 2/3 — возникает благодаря сложной структуре транспортных сетей организма, напоминающих фракталы.
Откуда именно 3/4, видно из трёх допущений модели Уэста, Брауна и Энквиста. Первое: капилляры одинаковы у мыши и слона, поэтому обмен пропорционален их числу $N$: $B\propto N$. Второе: при каждом ветвлении суммарное сечение сосудов сохраняется, значит радиус аорты растёт как $r_0\propto N^{1/2}$. Третье: сеть заполняет объём, и длина крупных сосудов растёт как $l_0\propto N^{1/3}$. Объём крови, а с ним и масса тела, пропорционален $r_0^2 l_0\propto N\cdot N^{1/3}=N^{4/3}$. Отсюда $N\propto M^{3/4}$ и $B\propto M^{3/4}$. Словами: чтобы напоить в десять раз больше капилляров, телу нужно в $10^{4/3}\approx 22$ раза больше объёма сосудов, а лишняя треть в показателе и превращает 1 в 3/4. Насколько эти допущения верны для живых организмов, предмет спора, о нём ниже.

Кто открыл. Что крупные животные экономнее мелких на единицу массы, первым измерил Макс Рубнер в 1883 году на собаках и объяснил площадью кожи — показателем 2/3. Швейцарец Макс Клайбер в 1932 году собрал данные от мыши до быка и получил не 2/3, а 3/4 — «закон Клайбера», и шестьдесят лет никто не мог сказать почему. Объяснение через ветвящуюся сеть сосудов дали в 1997 году Джеффри Уэст, Джеймс Браун и Брайан Энквист; в России тот же показатель выводил из энергетики организма физик Виктор Горшков, и в лекции для тропы закон назван законом Клайбера — Горшкова1.
Спор, которому больше века Конкурируют два объяснения. Правило поверхности (Рубнер, 1883): тепло теряется через кожу, площадь растёт как $M^{2/3}$, значит и обмен должен идти как $M^{2/3}$. Фрактальная сеть (Уэст, Браун, Энквист, 1997): доставка ограничена ветвящейся сосудистой системой, оптимальная её геометрия даёт ровно $M^{3/4}$. Измерения Клайбера 1932 года дали 0,74 — ближе ко второму. Но последующие ревизии данных на больших выборках возвращают значения между 0,67 и 0,76 в зависимости от того, какие виды включены и как учтена температура тела. Спор не закрыт: одни считают 3/4 фундаментальным следствием геометрии сетей, другие — статистическим артефактом усреднения по слишком разным организмам. Спорны и сами допущения модели: условие, что сеть заполняет весь объём тела, критиковали теоретически (Kozłowski и Konarzewski, 2004), а измерения сосудов человека по магнитно-резонансной ангиографии не подтвердили закон сохранения длины на ветвлениях: примерно в 65 % узлов измеренные длины не укладываются в него настолько, что показатель не определён2.
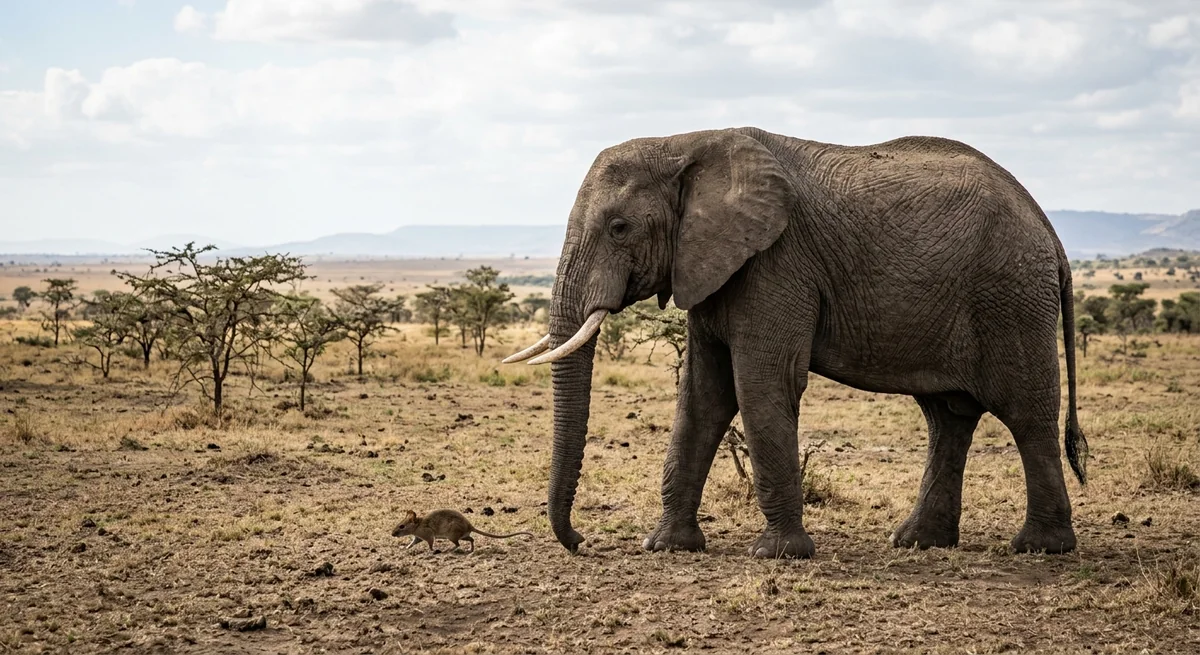
Человек массой 70 кг и мышь массой 20 граммов различаются по массе в 3500 раз, а по базальному обмену — примерно в 450 раз ($3500^{3/4} \approx 455$). Словами: на каждый грамм тела мышь тратит энергии в семь-восемь раз больше человека. Отсюда и её пульс — 500–600 ударов в минуту против наших семидесяти, и продолжительность жизни в два-три года: суммарное число сердечных сокращений за жизнь у млекопитающих держится в пределах одного порядка.
Открытый вопрос. Три четверти или две трети? Данные по млекопитающим при пересчёте с поправкой на родство и температуру дают показатель между 0,67 и 0,75, и разница в этих сотых — разница между двумя теориями: поверхностью тела и геометрией сети. Чтобы её увидеть, нужны измерения обмена у тысяч видов в одинаковых условиях, и их пока нет.
Лекция по теме Александр Гасников, «Закон Клайбера—Горшкова» — вывод показателя ¾ через геометрию сосудистой сети и следствия для пульса и продолжительности жизни.
Александр Гасников, «Теорема Бэкингема, соображения подобия и размерностей» — откуда вообще берутся степенные законы и как их получить из одних размерностей.
Закон Клайбера: интенсивность обмена $B \sim M^{3/4}$. Объяснение через фрактальные транспортные сети организма предложили G. B. West, J. H. Brown, B. J. Enquist, «A General Model for the Origin of Allometric Scaling Laws in Biology», Science 276 (1997), 122–126. ↩
Newberry M. G., Ennis D. B., Savage V. M. Testing foundations of biological scaling theory using automated measurements of vascular networks. 2015, arXiv:1509.02824; там же ссылка на Kozłowski J., Konarzewski M. Is West, Brown and Enquist's model of allometric scaling mathematically correct and biologically relevant? Functional Ecology 18(2):283–289, 2004. ↩
 Научно-популярный туризм